商机详情 -
GPCR蛋白表达市场现状
体外蛋白表达正在推动 无细胞合成生物学 的范式革新:人工代谢通路重构: 在裂解物中整合多酶级联反应,利用底物通道效应实现小分子化合物的高转化率合成;基因振荡器开发: 通过T7 RNA聚合酶的自调控表达构建分子钟,模拟细胞周期节律;仿生细胞构建: 将蛋白表达系统封装于脂质体内,结合ATP再生模块(如bing tong酸激酶系统)创建可自我维持的人工细胞雏形。这种 “设计-构建-测试”闭环 明显加速了生物系统的理性设计进程。nuclera 高通量微流控蛋白表达筛选系统可助力体外蛋白表达,如想了解更多信息,欢迎咨询官方代理商上海曼博生物!从模板添加到获得功能性体外表达蛋白只需6小时,而HEK293系统需两周。GPCR蛋白表达市场现状
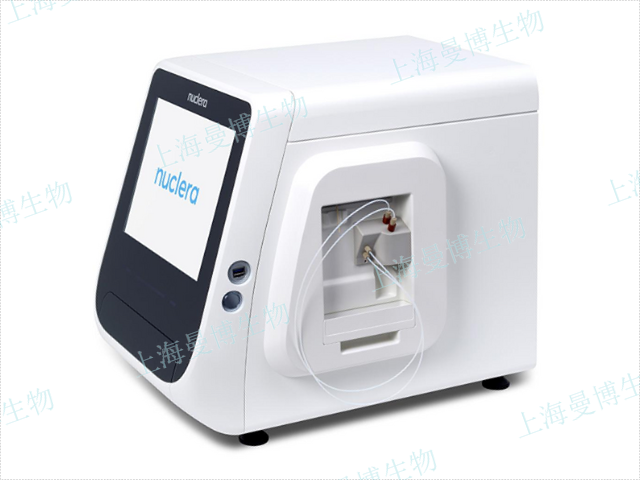
无细胞蛋白表达技术的市场潜力主要来自三大驱动力:药物研发效率提升、合成生物学产业化和诊断技术革新。制药公司采用无细胞蛋白表达技术加速抗体和CAR-T细胞zhi liao药物的开发,将传统数月的过程缩短至数周。在合成生物学中,无细胞蛋白表达技术被用于规模化生产人工酶和生物材料(如蜘蛛丝蛋白),推动可持续制造。此外,基于无细胞蛋白表达技术的便携式诊断系统(如病原体检测、ai症早筛)因其低成本和快速响应能力,在POCT(即时检验)市场崭露头角。随着自动化微流控设备的普及,无细胞蛋白表达技术正从实验室走向GMP生产,满足工业级蛋白制造的需求。293蛋白表达公司大肠杆菌体外蛋白表达的单次反应成本($1.5)只为哺乳细胞系统的 1/50。
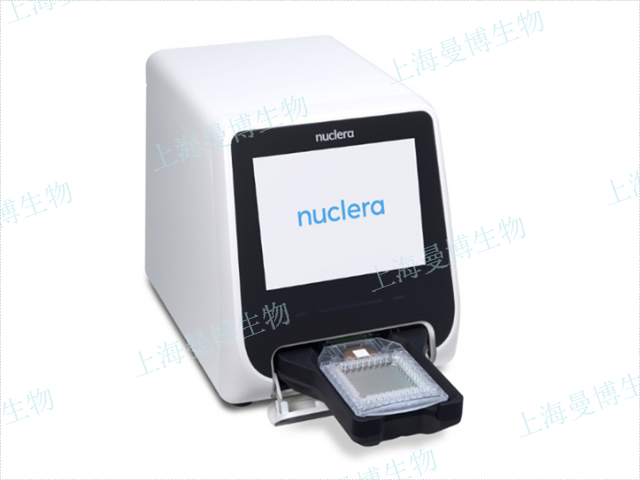
无细胞蛋白表达技术在实际应用中也存在一些技术短板。由于反应体系缺乏活细胞的代谢调控机制,能量供应和原料再生效率较低,导致反应持续时间较短(通常只维持4-6小时),限制了蛋白产量的进一步提升。同时,该技术对反应环境高度敏感,温度波动、氧化应激或污染物都可能影响蛋白合成效率,这对实验操作的稳定性提出了更高要求。此外,虽然CFPS能表达传统细胞系统难以生产的毒性蛋白,但对于需要复杂折叠或多亚基组装的蛋白(如某些膜蛋白或超大分子复合物),其成功率仍然有限。
体外蛋白表达技术的重点在于利用细胞裂解物中的生物合成机器(核糖体、tRNA、翻译因子)在试管中直接合成蛋白质。以大肠杆菌系统为例:首先制备含T7启动子的线性DNA模板,将其与商业化裂解物(如RocheRTS100)、能量混合物(ATP/GTP)及20种氨基酸混合,在37℃振荡反应2-4小时即可完成蛋白表达。整个过程无需细胞培养与基因转染,速度比传统方法快10倍以上。例如,COVID19刺突蛋白RBD结构域的体外表达只需6小时,而HEK293细胞系统需5天。该技术的关键优势是开放体系的可编程性——可直接添加非天然氨基酸(如Azidohomoalanine)合成定制化蛋白,为药物偶联物开发提供高效平台。对于需糖基化的抗体, 哺乳细胞体外表达比原核系统更适用。

无细胞蛋白表达技术的模板可以是线性DNA(如PCR产物)或环状质粒,需包含启动子(如T7/T3/SP6)和核糖体结合位点(RBS)以启动转录翻译。为提升效率,系统可能添加分子伴侣(如DnaK/GroEL)辅助蛋白折叠,或氧化还原剂(如谷胱甘肽)促进二硫键形成。部分高级系统(如PURE体系)使用纯化重组元件替代粗提物,实现更高可控性,但成本较高。无细胞蛋白表达技术可灵活引入非天然氨基酸(nnAA),扩展了蛋白质的功能多样性。例如,通过定制tRNA和氨酰-tRNA合成酶,无细胞蛋白表达技术系统能准确将荧光标记或交联基团嵌入目标蛋白,用于结构生物学或药物偶联开发。更前沿的应用是人工生命体系的构建,如利用无细胞蛋白表达技术合成噬菌体或人工细胞雏形,结合微流控技术模拟细胞内代谢网络,为合成生物学研究提供可控的简化模型。通过微型化体外蛋白表达系统, 24小时内测试了50种激酶抑制剂的效价。大肠杆菌诱导蛋白表达包涵体
相比细胞培养, 体外蛋白表达将xinguanbingdu抗体验证周期从3周缩短至8小时。GPCR蛋白表达市场现状
相较于原核表达体系,真核体外蛋白表达的he xin优势在于具备部分翻译后修饰能力,但 关键修饰途径仍存在明显局限。在缺乏内质网-高尔基体转运机制的情况下,糖基化修饰通常终止于高甘露糖型(Man₅GlcNAc₂)阶段,无法合成复杂双触角唾液酸化糖链。这一缺陷直接影响zhi liao性抗体的抗体依赖性细胞介导的细胞毒性(ADCC)效应。同时,裂解物中二硫键异构酶(PDI)与分子伴侣(如BiP)的活性不足,导致含多对二硫键的蛋白错误折叠率升高40%-60%。为克服此瓶颈,需在裂解物中外源性添加重组糖基转移酶复合体(如GnT-I/GnT-II/FUT8)以重构修饰途径,并通过优化氧化还原电势(Eh=-230 mV至-280 mV)改善二硫键形成效率。体外蛋白表达的这些修饰缺陷是目前制约其应用于功能性糖蛋白生产的主要因素。GPCR蛋白表达市场现状